Слух и аудио. Часть 2: разрешающая способность слуха
Наш слух — преобразование звука в нервные сигналы и обработка этих сигналов — устроен гораздо сложнее, чем многие из нас представляют. Эта серия из двух статей знакомит с новейшими результатами исследований слуха и рассматривает, как они влияют на наши представления о максимально точном воспроизведении музыки. Вторая статья посвящена разрешающей способности слуха, порогам обнаружения различий и последствиям для слепых тестов.
Как отмечалось в первой части этой серии — «Частота, фаза и время», — часть скептицизма в отношении аудио высокого класса, high-end audio (HEA), основана на недостаточном понимании работы слуха. Это непонимание приводит к неправильно организованным слепым прослушиваниям и самоисполняющемуся пророчеству: результаты могут ошибочно подтверждать несостоятельность заявлений о преимуществах HEA. Следующее изложение представляет собой упрощённую и сокращённую выдержку из обстоятельной обзорной статьи [1]. Читателям, желающим разобраться глубже, следует обратиться к этому обзору, другим цитируемым работам и статьям на сайте автора.
Физиология человеческого уха
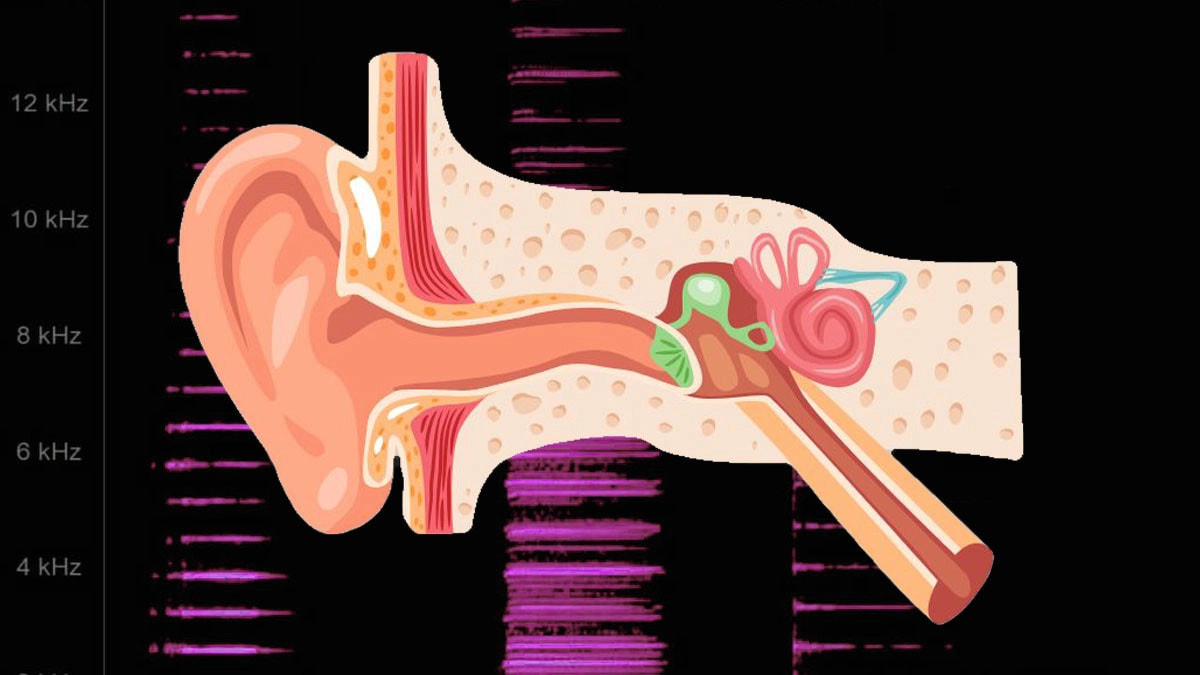
На рисунке 1 показано человеческое ухо в разрезе. После прохождения ряда нелинейных и активно регулируемых этапов в наружном и среднем ухе звуковые колебания попадают в заполненную жидкостью улитку. Они распространяются по лестнице преддверия, разворачиваются у дальнего конца — верхушки — и возвращаются по барабанной лестнице, прежде чем вновь выйти в среднее ухо. Эта бегущая волна вызывает колебания базилярной мембраны, на которой расположены 3500 рядов волосковых клеток.
На рисунке 2 показан участок базилярной мембраны. Её форма и свойства меняются по длине: высокие частоты вызывают максимальный резонанс вблизи входа — овального окна, — а низкие частоты — вблизи дальнего конца, верхушки. Эта структура работает как нелинейный, чрезвычайно сложный 3500-канальный анализатор спектра — и выполняет другие функции. На напряжение, создаваемое внутренними волосковыми клетками (IHC), работающими подобно микрофонам, влияют пять ступеней активной обратной связи.
Последующая обработка в нервной системе выполняет многочисленные спектрально-временные анализы, выявляя взаимосвязи между каналами, например относительные моменты начала звуковых составляющих. Поэтому упрощённый спектральный анализ аудиооборудования позволяет лишь в самой малой степени предсказать его звучание.

Рисунок 1.
(а) Человеческое ухо в разрезе. В наружном ухе звук поступает через ушную раковину, проходит по слуховому проходу и на барабанной перепонке преобразуется в механические колебания. В среднем ухе эти колебания проходят механическое и гидравлическое усиление, прежде чем через овальное окно передаются в улитку.
(б) Улитка в разрезе. Колебания поступают через овальное окно в лестницу преддверия, распространяются до верхушки и возвращаются по барабанной лестнице. Эта бегущая волна вызывает колебания базилярной мембраны, расположенной между барабанной лестницей и улитковым протоком — средним каналом.
Рисунок адаптирован из источника [1].
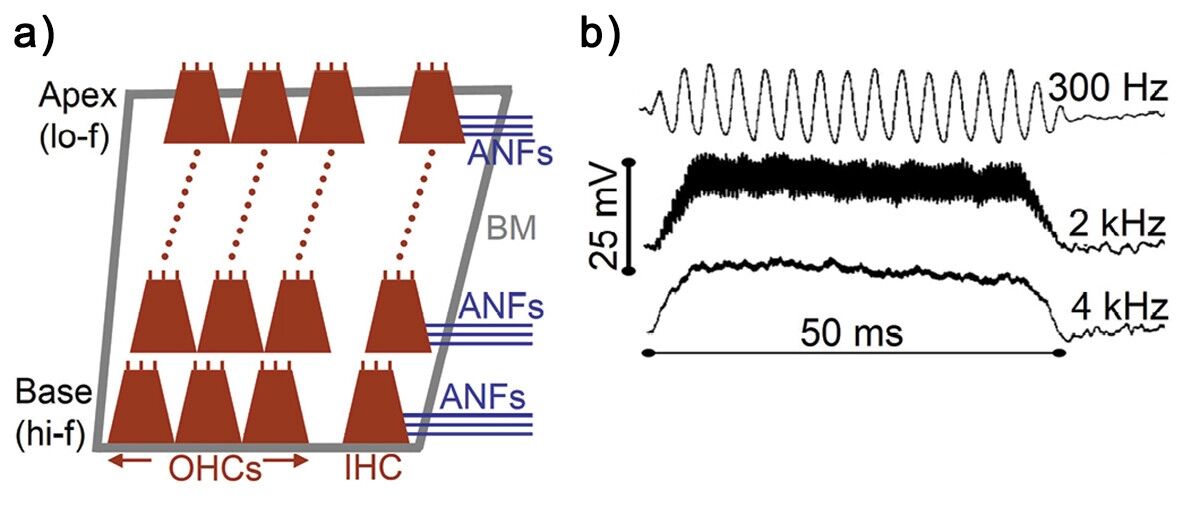
Рисунок 2.
(а) Участок базилярной мембраны с несколькими рядами волосковых клеток. Внутренние волосковые клетки (IHC) работают подобно «микрофонам» и создают напряжение в ответ на колебания. Наружные волосковые клетки (OHC) работают подобно «громкоговорителям»: создавая звук и движение, они активно усиливают или ослабляют отклик внутренних волосковых клеток — в некотором роде как наушники с активным шумоподавлением. Каждая внутренняя волосковая клетка настроена на свою частоту. Вся система работает как 3500-канальный анализатор спектра.
(б) Выходное напряжение внутренних волосковых клеток [3]. В высокочастотных каналах на протяжении звучания возникает плато: информация о фазе отдельных периодов отсутствует, сохраняется лишь временная информация о начале звука на этих частотах.
Рисунок адаптирован из источника [1].
Разрешение деталей
3500 «аналоговых», то есть непрерывно меняющихся, напряжений внутренних волосковых клеток представлены «оцифрованной» картиной импульсной активности 30 000 волокон слухового нерва. В совокупности она называется паттерном нейронного возбуждения, или NEP. Объём информации, представленный этой картиной в каждый момент времени, настолько огромен, что назвать его «астрономическим» — значит оскорбить ухо. Очень осторожная оценка нижней границы [1] разрешения деталей, то есть числа возможных вариантов, составляет:
RD > 10⁴⁰.
В этом числе на 17 нулей больше, чем в числе всех звёзд во Вселенной! [2] Эта информация проходит масштабную обработку в нервной системе, как показано на рисунке 3. Блок-схема приведена здесь, чтобы дать представление о невероятной сложности нейрофизиологии человеческого слуха; подробное описание её работы дано в другом источнике [1].
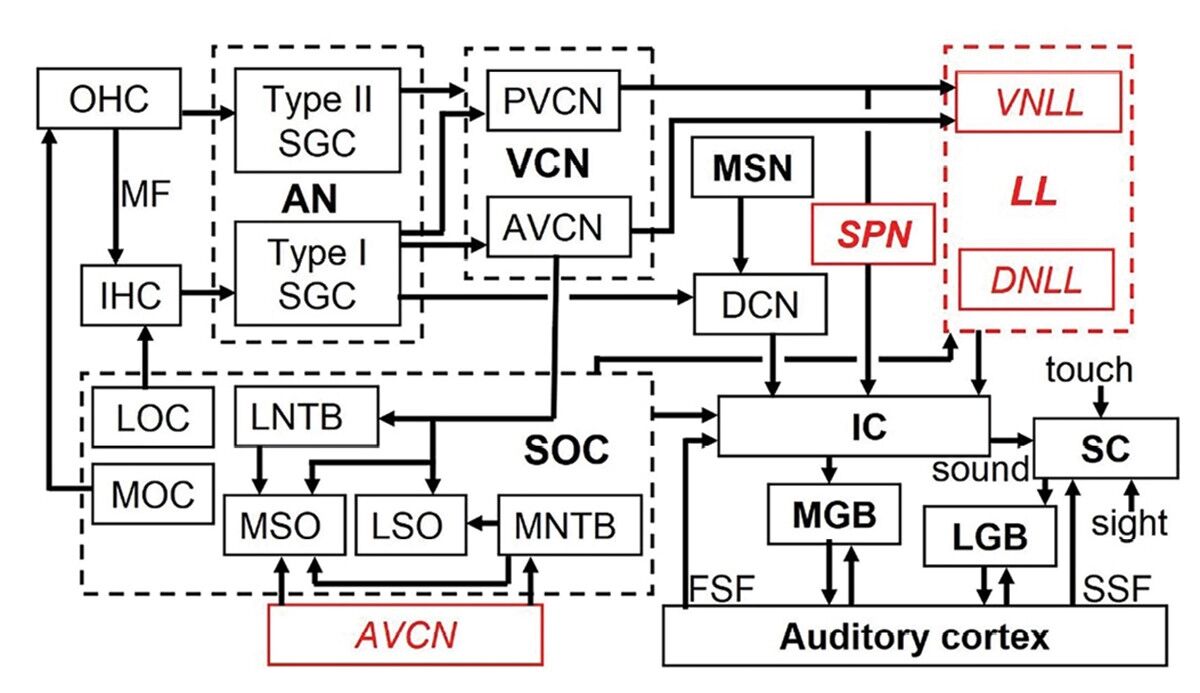
Рисунок 3. Аналоговые, то есть непрерывно меняющиеся, рецепторные напряжения, возникающие во внутренних волосковых клетках (IHC), «оцифровываются» и передаются по слуховому нерву (AN) к заднему вентральному (PVCN), переднему вентральному (AVCN) и дорсальному (DCN) улитковым ядрам.
Путь AVCN → MSO выявляет бинауральные межушные разности времени (ITD) для каждой частоты. Путь PVCN → VNLL выявляет монауральные временные различия между началами разных частотных составляющих в каждом ухе. Эта обработка происходит в стволе мозга. Другие пути и общий анализ в нервной системе подробно описаны в источнике [1].
Сокращения на схеме:
-
SOC — верхний оливарный комплекс;
-
MSO — медиальная верхняя олива;
-
LL — латеральная петля;
-
VNLL — вентральное ядро латеральной петли;
-
DNLL — дорсальное ядро латеральной петли;
-
SGC — клетка спирального ганглия;
-
OHC — наружная волосковая клетка;
-
MF — механическая обратная связь;
-
MSN — соматосенсорное ядро продолговатого мозга;
-
SPN — верхнее параоливарное ядро;
-
LNTB — латеральное ядро трапециевидного тела;
-
LSO — латеральная верхняя олива;
-
LOC — латеральная оливокохлеарная система;
-
MOC — медиальная оливокохлеарная система;
-
IC — нижние холмики;
-
SC — верхние холмики;
-
MGB — медиальное коленчатое тело;
-
LGB — латеральное коленчатое тело;
-
FSF — обратная связь, повышающая частотную избирательность;
-
SSF — обратная связь, повышающая пространственную избирательность.
Рисунок адаптирован из источника [1].
Огромный объём подробной информации в паттерне нейронного возбуждения создаёт проблему для слепых прослушиваний. Традиционные быстрые тесты A–B основаны на предположении, что при длительном промежутке между A и B испытуемый может забыть первый звук. Это ошибка, поскольку при таком подходе испытуемый опирается на кратковременную память, которая сохраняет информацию до 15–30 секунд и способна удерживать лишь около четырёх элементов. Такой метод может хорошо работать, когда в простом звуке меняется один параметр, например при определении едва заметного различия частоты чистого тона — JND.
Однако изменения тембра из-за искажений в аудиотракте связаны с множеством тонких изменений паттерна нейронного возбуждения. Они выходят за пределы возможностей кратковременной памяти. Чтобы усвоить эту подробную информацию, необходимо долго слушать сложную музыку, делая между A и B паузу длительностью не менее минуты — своего рода «очищение восприятия». Это сбрасывает кратковременную память и задействует устойчивую, несравнимо более подробную долговременную память. Такой подход, основанный на длительных многократных прослушиваниях — extended-multiple-pass, EMP, — привёл к историческому доказательству того, что кабельные соединения между аудиокомпонентами дают слышимые различия [3].
Временное разрешение
В первой части этой серии обсуждалась ошибочная практика принимать обратную величину характерной частоты, 1/f₍C₎, за характерное время τ. Такой подход не всегда работает даже для физических систем, а применительно к слуху он ещё менее надёжен.
Упрощённо говоря, в слухе действуют два вида временного разрешения. Первый — бинауральная межушная разность времени, ITD, то есть различие времени поступления звука заданной частоты в два уха. Второй — монауральное разрешение переходных процессов, TR, то есть различие времени поступления разных частотных составляющих в одно ухо. Им соответствуют основные пути AVCN → MSO и PVCN → VNLL, показанные на рисунке 3.
Сначала рассмотрим бинауральную ITD. Как показано на рисунке 4а, звук, приходящий прямо спереди — при азимутальном угле θ = 0, — достигает обоих ушей одновременно. При других направлениях он приходит с относительной задержкой:
ITD = d sin(θ)/v.
На рисунке 4б приведены классические результаты опубликованных слепых прослушиваний [5, 6], определивших порог обнаружения ITD на различных частотах. Обратите внимание: наименьшая различимая ITD — около 9 мкс при частоте около 900 Гц — составляет одну сотую периода! На более высоких частотах порог ITD, напротив, хуже: например, около 140 мкс при 1400 Гц. Это противоречит привычному ожиданию, что более высоким частотам соответствуют более короткие времена отклика.
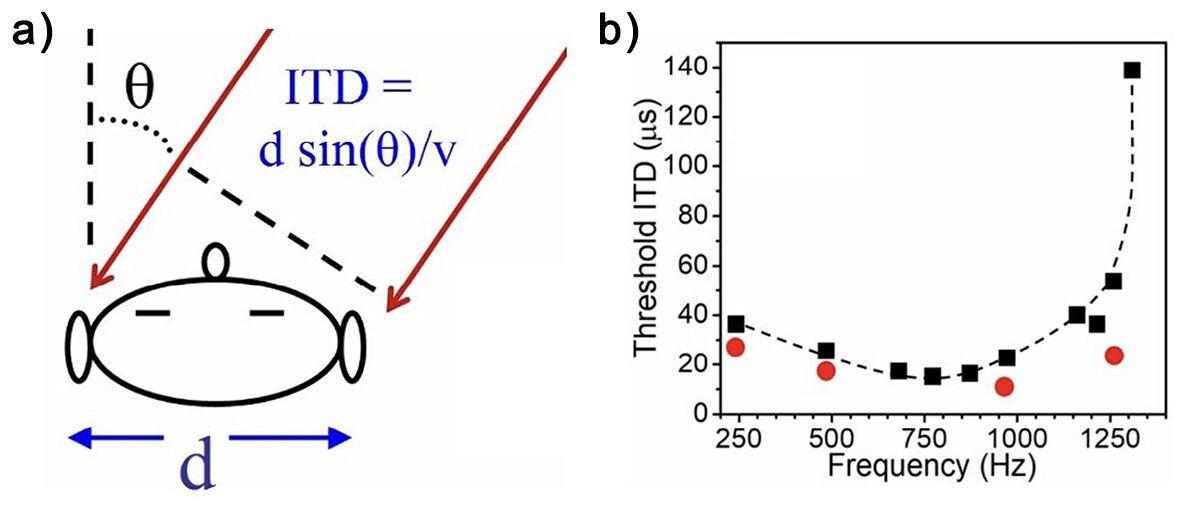
Рисунок 4.
(а) Межушная разность времени (ITD) для звука, приходящего сбоку, вызвана геометрической задержкой d sin(θ)/v, где θ — азимутальный угол, d — расстояние между ушами, а v — скорость звука.
(б) Слепые прослушивания — психоакустические эксперименты — установили [4, 5], что ITD обнаруживается с микросекундной точностью.
Рисунок адаптирован из источника [1].
Точность передачи тембра в аудио преимущественно связана с монауральным разрешением переходных процессов, TR. В первой части этой статьи — март 2024 года — мы увидели, что ключевую роль играют относительные моменты начала разных частотных составляющих и атака, а также другие этапы огибающей. В мозге существуют специальные нейронные цепи, выявляющие эту синхронность между частотами.
Процесс обнаружения, определяющий TR, начинается с октопусных клеток (OC) в заднем вентральном улитковом ядре, PVCN, — см. рисунок 3. На рисунке 5а показана октопусная клетка. Её дендриты, то есть «входы», расположены перпендикулярно волокнам слухового нерва, что позволяет объединять информацию из широкого диапазона частотных каналов. Работая как синхронный логический элемент «И», клетка выдаёт импульс, когда сигналы на её входах поступают вместе в пределах узкого временного окна.
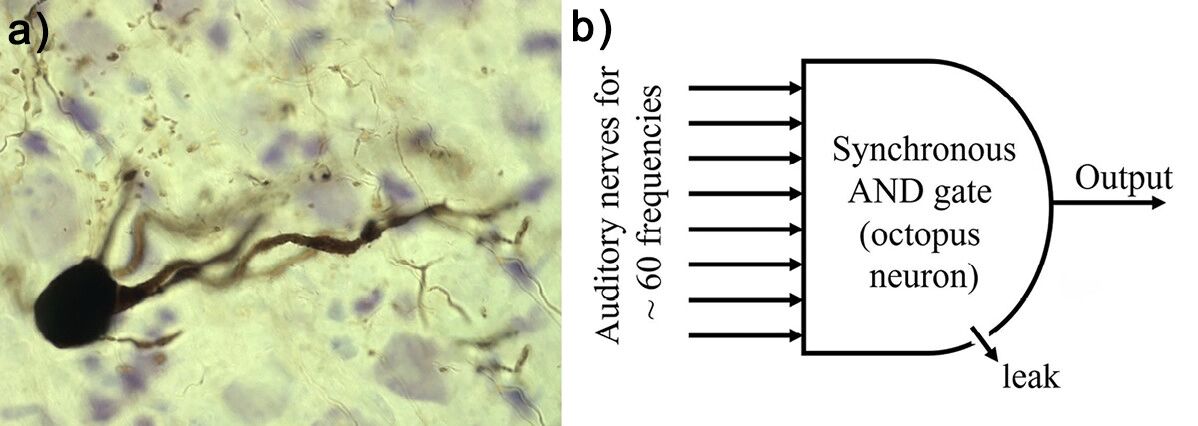
Рисунок 5.
(а) Изображение октопусной клетки — одного из основных нейронов заднего вентрального улиткового ядра, PVCN.
(б) Этот нейрон работает как синхронный логический элемент «И»: благодаря утечке через клеточную мембрану заряд от каждого входного сигнала быстро затухает. Вероятность выходного импульса отражает произведение перекрывающихся во времени вероятностей входных импульсов от разных частот и тем самым характеризует резкость звукового переходного процесса. Подробный анализ [1] обработки в пути PVCN → VNLL — см. рисунок 3, — учитывающий такие параметры, как входные сопротивления дендритов и клеточные постоянные времени, даёт оценку монаурального разрешения переходных процессов TR ≈ 1–10 мкс.
Подробный анализ нейронных процессов [1] оценивает итоговое разрешение переходных процессов как TR ≈ 1–10 мкс. Это хорошо согласуется с экспериментальным порогом 4–10 мкс, установленным в психоакустических измерениях Лешовица, которые обсуждались в первой части. Существенно, что TR не связано тесно с самой высокой частотой, которую способен слышать конкретный человек. Поэтому пожилой аудиофил, не слышащий частоты выше нескольких килогерц, всё ещё может различать особенности временной структуры в микросекундном диапазоне.
Заключение
Эта серия из двух статей даёт краткий обзор сложности, чувствительности и разрешающей способности человеческой слуховой системы. Она создаёт более обоснованную основу для обсуждения точности воспроизведения звука и помогает развеять множество ошибочных, глубоко укоренившихся предположений, распространённых в некоторых частях аудиосообщества.
Заинтересованным читателям настоятельно рекомендуется ознакомиться с более подробными работами, которые можно бесплатно скачать с сайта автора. В частности, упомянутый обзор слуха [1] необходим всем, кто хочет правильно понять, что происходит в нашем мозге после того, как звук достигает ушей.
Оригинал — Hearing and Audio: Part 2 - Auditory Resolution | audioXpress
Источники и примечания
[1] М. Н. Кунчур. «Человеческая слуховая система и аудио». Applied Acoustics, том 211, статья 109507, 2023. Бесплатный препринт.
[2] Максимальное значение может достигать RD ≈ 10⁸⁰, что примерно соответствует общему числу атомов во Вселенной!
[3] А. Р. Палмер и И. Дж. Расселл. «Фазовая синхронизация в улитковом нерве морской свинки и её связь с рецепторным потенциалом внутренних волосковых клеток». Hearing Research, том 24, № 1, с. 1–15, 1986. PMID: 3759671. DOI.
[4] М. Н. Кунчур. «Кабельные соединения между аудиокомпонентами могут влиять на воспринимаемое качество звука». Journal of the Audio Engineering Society, том 69, № 6, с. 398–409, 2021. DOI. Бесплатный препринт доступен на сайте автора.
[5] Р. Б. Клампп и Г. Р. Иди. «Некоторые измерения порогов межушной разности времени». Journal of the Acoustical Society of America, том 28, с. 859–860, 1956. DOI.
[6] А. Бругера, Л. Дунай и У. М. Хартманн. «Пороги межушной разности времени у человека для синусоидальных тонов: высокочастотный предел». Journal of the Acoustical Society of America, том 133, № 5, с. 2839–2855, май 2013 года. Указано как рисунок 1(в). DOI. PMID: 23654390; PMCID: PMC3663869.